Модул 5 · Поглавље 6
Стратегије прилагођавања животиња - одговори животиња: физиолошки, биохемијски, имунолошки, анатомски и понашајни
Прилагођавање сточарства климатским променама обухвата мере које потичу од самих животиња-анималне, као и оне које потичу од људи-хумане. Стока се природно прилагођава кроз различите механизме како би се носила са климатским условима, док хумана адаптација укључује примену пракси које помажу животињама да се прилагоде климатским променама и побољшају учинак стоке. У контексту сточарства, адаптације се могу класификовати у две примарне групе: одговори/стратегије адаптације животиња и људи. [1].
Ефекти климатских промена на сточарску производњу су разноврсни, а термички стрес се сматра највећим изазовом за животиње на фарми [2] . Важно је напоменути да су животиње ретко изложене само једном стресору. Поред топлотног стреса, оне могу имати истовремене проблеме као што су недовољна исхрана, недостатак воде и лоша исхрана. Комбиновани утицај вишеструких стресора може бити више од пуког збира њихових појединачних ефеката [3].
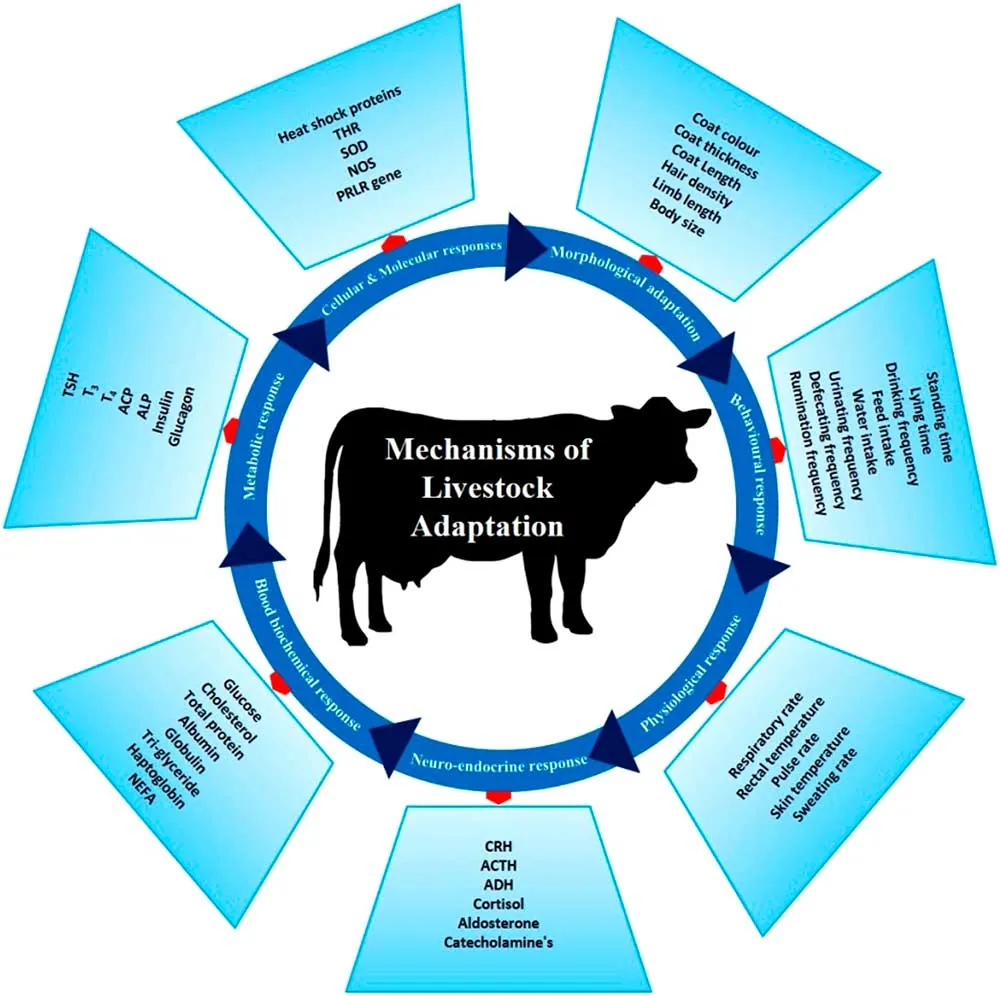
THR = рецептор тироидног хормона; SOD = супер оксид дисмутаза; NOS = синтаза азот оксида; PRLR = пролактински рецептор; CRH = кортикотропин-ослобађајући хормон; ACTH = адренокотикотропни хормон; ADH = антидиуретички хормон; NEFA = неестерификоване масне киселине; TSH = тироид-стимулишући хормон; T3 = тријодотиронин ; T4 = тироксин ; ACP = кисела фосфатаза; ALP = алкална фосфатаза.
Међутим, животиње имају инхерентне способности да издрже ризике везане за климу кроз процес прилагођавања. У одговору животиње на стресоре животне средине разликују се две фазе: почетни одговор на промену животне средине и каснији процес који покреће ендокрини систем. Настале промене имају за циљ смањење утицаја стреса на животињу, омогућавајући јој да ефикасније функционише у изазовном окружењу. Ако стресни услови трају кроз генерације, ове промене постају генетски фиксиране адаптације [4].
Ово поглавље има за циљ да пружи информације о значају путева адаптације домаћих животиња и различитим стратегијама које ће им помоћи да се носе са неповољним условима животне средине. У борби са климатским променама, отпорност и прилагодљивост домаћих животиња сведоче о вези еволуције и опстанка. Да би повратиле своју хомеостазу, животиње морају да се прилагоде тренутним климатским условима. Сходно томе, њихови одговори на специфичне стресоре могу бити понашајни-бихејвиорални, физиолошки, биохемијски, имунолошки, анатомски или комбинација ових фактора (Слика 1.). Ови одговори могу варирати у зависности од претходног излагања стресорима, трајања и тежине стреса, физиолошког стања и ограничења околине [5;6 ].
Иако постоје значајне разлике у толеранцији топлоте између врста, постоје и варијације између раса унутар врсте. Полигастричне животиње генерално показују виши ниво топлотне толеранције у поређењу са моногастричним животињама, али постоји и преклапање у распонима параметара животне средине за врсте и расе. Способност регулације телесне температуре зависи од сложених интеракција између анатомских и физиолошких фактора. Познато је да карактеристике као што су својства коже и длаке, знојење и способност дисања, изолација ткива, однос површине према телесној тежини или релативна величина плућа, као и ендокрини профили и метаболичка производња топлоте утичу на топлотно оптерећење, али одговарајући физиолошки, бихејвиорални или генетски механизми још нису разјашњени [7;8].
Физиолошке стратегије
Физиолошке стратегије су унутрашњи одговори домаћих животиња на климатске промене које им омогућавају да се носе са променљивим условима животне средине. Оне обухватају физиолошке одговоре животиња, укључујући промене телесних функција, метаболичких и ендокриних, како би се одржала хомеостаза и обезбедио опстанак у условима промене климе [9]. Животиње су развиле неколико физиолошких стратегија за суочавање са климатским променама [10]. Оне на пример, поседују механизме за регулисање телесне температуре, као што су дахтање и знојење.
Повећање брзине дисања дахтањем је кључни физиолошки механизам кроз који животиње под топлотним стресом расипају додатну топлоту испаравањем више влаге у околину [11]. Повећана брзина пулса омогућава животињама под топлотним стресом да побољшају циркулацију и редистрибуирају доток крви у кожу, што омогућава успешније ослобађање топлоте у спољашњу средину [12]. Поред тога, повишена ректална температура код животиња под топлотним стресом доприноси додатној дисипацији вишка топлоте ради одржавања хомеостазе [13]. Обезбеђивање специфичне регулације функције бубрега како би се одржао одговарајући ниво хидратације (вишак воде) под високим температурама такође се сматра једним од важних физиолошких одговора.
Свиње немају знојне жлезде, а имају и релативно мала плућа у односу на величину тела, што смањује њихово хлађење дахтањем. То их чини посебно осетљивим на дејство топлотног стреса, па је механизам ослобађања топлоте кроз кожу за њих од великог значаја.
Козе су добро познате по својој изузетној способности да смање брзину метаболизма и уђу у стање торпора током периода екстремне врућине или хладноће, што им помаже да штеде енергију и преживе тешке услове [14].
У оквиру физиолошких одговора на топлотни стрес, кључно је истаћи ендокрини одговор. Конкретно, надбубрежне и штитне жлезде, које су део ендокриног система, су кључне у помоћи животињама да се прилагоде топлотном стресу [15].
Ефекат високе температуре околине као стресног стимулуса активира хипоталамус-хипофизно-адренокортикалну осовину (ХПА) и симпатичко-надбубрежну медуларну осу (САМ) [15]. Ово доводи до ослобађања хормона одговорних за адаптацију животиња на топлотни стрес: глукокортикоида, катехоламина, антидиуретичког хормона (АДХ), тироидних хормона, минералокортикоида, хормона раста (ГХ) и пролактина (ПРЛ) [16]. Улога ових хормона у обезбеђивању термалне хомеостазе је другачија. На пример, повећана производња кортизола помаже животињама да задовоље додатне енергетске потребе за своје адаптивне процесе коришћењем глуконеогенезе у јетри [17]. У плазми и млеку крава у лактацији утврђено је значајно смањење концентрације тријодо-тиронина (Т3) и тироксина (Т4), што се сматра још једним адаптивним механизмом за смањење додатног топлотног оптерећења изазваног повећаном метаболичком активношћу [18]. Поред тога, уочена је угрожена активност осовине хипофизе и штитне жлезде код јуница, са отприлике 40%, 45,4% и 25,9% смањења нивоа ТСХ, Т4 и Т3 током топлотног стреса, што указује на њихову способност да производе мање метаболичке топлоте у покушају да се прилагоде топлотном стресу [19].
Биохемијске стратегије
Фармске животиње развиле су одређене биохемијске стратегије за прилагођавање климатским променама. Ове стратегије укључују производњу и регулацију специфичних биохемијских једињења која помажу животињама да се носе са изазовима климатских промена. Две главне адаптивне стратегије могу се разликовати у оквиру овог типа одговора: хематолошки одговор (1) и ћелијско-молекуларни одговор (2):
Хематолошки одговор
Када животиње доживе топлотни стрес, јављају се специфичне биохемијске промене које помажу у адаптацији и одржавању хомеостазе. Студије су идентификовале значајне промене у различитим биохемијским параметрима крви, укључујући запремину збијених ћелија (ПЦВ), хемоглобин (Хб), глукозу, албумин, укупни протеин, укупни холестерол и неестерификоване масне киселине (НЕФА).
-Продужена изложеност топлотном стресу доводи до смањења нивоа еритроцита и хемоглобина [20]. Наиме, излагање високим температурама околине доводи до повећане потрошње кисеоника, што резултира повишеним парцијалним притиском кисеоника у крви, чиме се у крајњем смањује еритропоеза.
-Смањење ПЦВ може се приписати вишку воде у циркулаторном систему, која је неопходна за дисипацију топлоте хемодилуцијом [21].
-Под утицајем топлотног стреса, ниво албумина у плазми расте, вероватно због његовог антиоксидативног дејства на повишене вредности слободних радикала током топлотног стреса [22]. Један пример биохемијске адаптације код стоке, посебно говеда, је регулација бубрежне функције за одржавање нивоа хидратације под високим температурама. Ове адаптације укључују промене у саставу крви, као што је повећање нивоа албумина у плазми да би се побољшао антиоксидативни капацитет и заштита од оксидативног оштећења изазваног топлотним стресом.
-Ниво глукозе се обично смањује као резултат смањене глуконеогенезе [23], док је смањење нивоа НЕФА у плазми повезано са њеном високом потрошњом као извором енергије у јетри и периферним ткивима [24]. Према Baumgard и Rhoads-у [25], смањење нивоа НЕФА може бити повезано са коришћењем глукозе за смањење метаболичке топлоте током топлотног стреса.
Ћелијско-молекуларни одговор
Ћелијски одговор на топлотни стрес је витални део способности животиња да толеришу високе температуре. Када су изложене повишеним температурама, мреже гена унутар и између ћелија активирају механизме који доводе до ћелијске адаптације. Кључни аспект ове адаптације је производња протеина топлотног шока (ХСП), који штите ћелије од оштећења изазваних топлотом и одржавају ћелијску стабилност [26]. ХСП су неопходни за спречавање денатурације и агрегације протеина током услова топлотног стреса.
Као одговор на топлотни стрес, ћелије смањују синтезу ДНК, транскрипцију и процесе транслације, модификују активност протеина и подстичу производњу ХСП [27]. Поред тога, долази до повећања оксидације глукозе и аминокиселина, смањења метаболизма масних киселина, активације ендокриног система као реакције на стрес и стимулације имуног система [4]. Гени повезани са синтезом ХСП, заједно са другим генима који се односе на толеранцију на топлоту, могу послужити као потенцијални индикатори за прилагођавање говеда и других домаћих животиња на стресоре климатских промена [28]. Идентификовање ових гена, који доприносе ћелијској толеранцији на топлоту, може се користити у одгајивачким програмима коришћењем маркера или за стварање нових раса животиња отпорних на топлоту.
Имунолошке стратегије
Климатске промене доводе до слабљења добробити и здравља животиња кроз пролиферацију болести које се преносе векторима и њихов штетан утицај на имуни систем животиња, узрокује супресију имунитета и повећану подложност инфекцијама [10] .
Топлотни стрес може пореметити равнотежу имуних ћелија, смањити производњу антитела и нарушити функцију имунолошких органа, као што су тимус и слезина, што доводи до повећане осетљивости на инфекције [29].
Различите врсте домаћих животиња показују различите одговоре на топлотни стрес у смислу њихове имунолошке функције и способности да се боре против патогена. Међутим, у томе постоје одређена физиолошка ограничења, пре свега условљена генетиком и специфичностима средине гајења.
За разлику од домаћих животиња које се узгајају у умереним климатским условима и које доживљавају повремене топлотне шокове, њихови дивљи сродници и расе гајене у топлим и сувим регионима су током времена развиле одређене специфичности имуног система, што их чини отпорнијим на услове топлотног стреса. На пример, једна од врста на које топлотни стрес највише негативно утиче су говеда, а посебно музне краве [30]. За разлику од говеда, камила дромедара се може сматрати моделом различите имунолошке реактивности на топлотни стрес, што помаже бољем разумевању механизама термотолеранције развијених код врста прилагођених топлој клими. Hussen-ова студија [31] показала је појачану фагоцитозу и активности производње реактивних врста кисеоника (РОС) неутрофила и моноцита камиле изазваних топлотом према S.aureus, што је у супротности са пријављеним инхибиторним ефектом топлотног стреса на антимикробне функције неутрофила код говеда. У оквиру раса говеда, Bos indicus (Зебу), су показала бољу адаптацију на топлотни стрес због своје толеранције на топлоту и способности да одрже имунолошку функцију под високим температурама [32] .
Већа експресија гена за имуни одговор, као што су рецептор налик на toll-like (ТЛР) ТЛР2/4 и интерлеукини (ИЛ) ИЛ2/6, такође је забележена код говеда тарпаркар расе под топлотним стресом, што сугерише активније имунолошке функције код ове раса у супротстављању ефектима топлотног стреса [33].
Слични резултати повећане експресије ТЛР1, ТЛР4 и ТЛР5 пријављени су код аутохтоних османабади коза изложених стресорима из околине, као што су топлотни стрес, стрес у исхрани и комбиновани топлотни и нутритивни стрес [34]. Повећана експресија ТЛР-а јасно указује на активнији имуни систем ове расе чак у условима топлотног стреса, доказујући њихову способност прилагођавања.
Топлотни стрес код оваца може угрозити њихов имуни одговор, чинећи их подложнијим паразитским инфекцијама и респираторним болестима. Међутим, неке расе оваца, као што је афричка дамара, еволуирале су у условима тропског климата и поседују бољу отпорност на топлотни стрес, одржавајући и своју имунолошку функцију и отпорност на патогене [35] . Истраживање које су спровели Astuti и сар. [36] је показало је да мађарска цигаја , као аутохтона раса, показује супериорну термотолеранцију и имуне способности под топлотним стресом у поређењу са мађарским мерином и белим дорпером, тропском расом. Студија Daramola и Adeloye [37] указује на то да козе обично имају већи број лимфоцита него неутрофила у циркулацији, што указује на добро развијен имуни систем ове врсте. Последично ће животиње прилагођене топлотном стресу вероватно имати боље опште здравље због својих физиолошких адаптација и ћелијско-молекуларног одговора.
ФАО [38] је формирао каталог раса, претежно из земаља у развоју, познатих по својој отпорности или толеранцији на трипаносомијазу, инфестацију крпељима, болести које преносе крпељи, ендопаразите, дерматофилозу итд., који обухвата 59 раса говеда, 33 раса оваца, 6 раса коза, 5 раса коња и 4 расе бивола.
Иако тренутно недостају чврсти научни докази, претпоставља се да тропске расе домаћих животиња не само да показују бољу толеранцију на топлотни стрес, већ поседују и адаптибилнији имуни систем за патогене типичне за регионе са вишим температурама околине. Ова потенцијална предност се може искористити у одгајивачким програмима домаћих животиња као обећавајућа технологија за повећање термо-резилијентност.
Анатомско-морфолошке стратегије
Значајан одговор домаћих животиња на топлотни стрес представљају анатомске промене које омогућавају животињама да се боре и преживе у променљивим условима животне средине [39]. Овај феномен, који се често занемарује, баца светло на пластичност и прилагодљивост врста суочених са климатским променама.
Примарне анатомске промене могу укључивати промене у величини тела и телесних партија, боји и типу длаке и у респираторном систему [40]. Штавише, животиње могу развити специфичне морфолошке карактеристике као што су веће пљувачне жлезде, већу површину апсорпционе слузокоже и способност да значајно повећају запремину предњег дела дигестивног тракта при конзумацији оброка богатих влакнима [41].
Боја длаке, тип и густина
Физичка структура длаке служи као примарна баријера између тела и околине. Различите карактеристике длаке директно утичу на размену топлоте са околином. Структура длаке пружа заштиту од директног сунчевог зрачења и олакшава конвекцију и губитак топлоте кроз испаравање. Кључне карактеристике укључују рефлексију длаке, дужину длаке и густину длаке по јединици површине коже [8].
У тропским пределима, животиње са светлом длаком рефлектују више од половине директног сунчевог зрачења, за разлику од тамно обојених животиња [8]. Адаптације у овим регионима подразумевају поседовање длаке светле боје, као што је бела, светлоцрвена или црвена, која помаже у рефлектовању сунчевог зрачења и минимизирању апсорпције топлоте. Говеда у топлим и сушним срединама имају бенефите од својих светлих длака као заштитног механизма против сунчевог зрачења, одбијајући, а не апсорбујући зрачење. Da Silva и сар. [42] су утврдили да боја длаке утиче на терморегулаторно понашање млечних крава. Краве са светлом длаком показале су већу отпорност на топлотни стрес у односу на краве тамне длаке, што утиче на њихово понашање у тражењу сенке и избегавању топлоте. Штавише, говеда у врућим срединама имају глатку, лагану, кратку и танку длаку, као и мање фоликула длаке по јединици површине, што омогућава максимално расипање топлоте током стресних услова. Дакле, комбинација светле длаке и специфичних карактеристика длаке омогућава стоци у топлим и сушним срединама да се боље носи са високим температурама [2].
Овце поседују дебело вунено крзно које делују као изолација током хладног времена и помажу у регулисању телесне температуре у екстремним врућинама [43]. Непожељне особине вуне код оваца, као што су тамно, дуго и густо руно, могу изазвати прегревање. Насупрот томе, мања дебљина и густина руна, са кратким и густим влакнима олакшава дисипацију прекомерне телесне топлоте доприносећи хомеостази и бољим перформансама. Аутохтоне расе оваца у аридним и полусушним регионима поседују морфолошке карактеристике попут тепих типа вуне, који пружа бољу заштиту од директног зрачења. Ова врста вуне такође омогућава ефикасно одвођење топлоте током испаравања [44]. Неке расе оваца имају дебео реп који се сматра морфолошком адаптацијом која омогућава боље одавање топлоте [45].
Величина тела
Величина тела директно утиче на енергију потребну за одржавање, раст и производњу, тако да промене у функционалним особинама као што је величина тела имају значајне реперкусије на термалну биологију и енергију животиња. Стога, у условима климатских промена, један од адаптивних одговора може бити смањење величине тела. На пример, у топлијој клими, животиње могу бити мање величине јер мања тела имају већи однос површине и запремине, што омогућава бољу дисипацију топлоте [46]. Elayadeth-Meethal и сар. [47] испитивали су прилагодљиву толеранцију на топлотни стрес код патуљастих раса говеда (DCB, Bos taurus indicus) поредећи њихове терморегулаторне одговоре са онима код раса говеда стандардне величине (SCB, мелези Bos taurus indicus × Bos taurus taurus). Утврђено је да иако се СЦБ може краткорочно аклиматизирати на више температуре, DCB су добро прилагођени топлијој клими на дуже стазе. Повећана концентрација хемоглобина и смањена величина ћелија DCB -а додатно доприносе побољшаној топлотној толеранцији.
Телесне партије-екстремитети
Величина и карактеристике телесних партија животиња, као што су репови, кљунови и ноге, кључни су за регулисање телесне температуре путем размене топлоте. Веће површине за знојење или дахтање, заједно са повећаним протоком крви у периферна ткива, представљају пример анатомске еволуције домаћих животиња за ефикасну регулацију телесне температуре и смањење ризика од хипертермије. Ово доводи до варијација у морфологији животиња у различитим географским областима, при чему животиње у топлијим регионима имају веће екстремитете у односу на укупну величину тела. Овај феномен, познат као 'Аленово правило', није добио довољно пажње у односу на његову улогу у климатским променама [48]. Према овом правилу, већи екстремитети у односу на величину тела обезбеђују већу површину за ефикасно одвођење телесне топлоте. Као резултат тога, већи екстремитети могу бити корисни у топлијим климама, али можда неће бити толико корисни у хладнијим климатским подручјима.
Код птица, делови тела попут кљуна садрже бројне крвне судове и нису прекривени перјем, што их чини кључним за ослобађање топлоте. Ово се такође односи на непернате или непокривене ноге птица и сисара, које помажу у регулисању телесне температуре. Код сисара, уши и репови такође играју улогу у ослобађању топлоте. Добри примери су браманска говеда и нубијске козе. Верује се да коришћење ових делова тела за регулацију температуре лежи у основи образаца уочених у Аленовом правилу, пошто ове површине нуде ефикасно средство за регулисање одавања топлоте.
Респираторни систем
Респираторни систем домаћих животиња може бити подвргнут модификацијама у одговору на климатске промене [10]. На пример, животиње могу развити већи капацитет плућа или измењене обрасце дисања (дахтање) како би побољшале своју способност да регулишу телесну температуру и да се носе са топлотним стресом.
Морфолошке адаптације код различитих врста фармских животиња
Када је реч о климатским променама, посебно врућинама и суши, козе показују највеће способности прилагођавања у односу на све домаће животиње. Оне могу да одају топлоту кроз своје рогове и преживљавају на минималној вегетацији. Козе са висећим, дугим ушима и набораном кожом, као што су козе бурске и нубијске расе, показују тенденцију бољег преживљавања у изазовним, сушним условима.
Овце су мање толерантне на топлоту у поређењу са козама, иако вуна нуди одређену одбрану од високих температура. Овце са длаком уместо вуне још боље подносе топлоту. На пример, расе као што су дебелорепи црвени масаи и сахелска овца, успевају у условима са ограничено доступношћу водое и ретким растињем. Јужноафрички дорпер и каракулска овца у пустињама централне Азије се одлично сналазе у условима суше, преживљавајући тешку несташицу воде тако што складиште масноћу у репу, која има сличну функцију као камиља грба.
Континенталне расе говеда, посебно високопродуктивне млечне расе, подложне су утицају високих температура, за разлику од својих тропских сродника из Азије и Африке (Зебу, Брахман, Гир, итд.). Стога, да би се побољшала њихова способност преживљавања у променљивим климатским условима, препоручљива је интродукција гена као што је глатки ген за кратку длаку, издужени облик тела и друге гене из генотипа тропских говеда.
Код живине, одсуство перја на врату код головратих врста кокошака (тзв. Голошијанки), даје изразиту предност у суочавању са топлотним стресом. Поред тога, пилићи са већим крестама и минђушама такође боље подносе такве услове.
Поткожна масноћа, недостатак изолационог крзна, мала плућа, немогућност знојења и дахтања дефинишу свиње као најосетљивију врсту на топлотни стрес. Дурок показује умерени ниво отпорности на топлотни стрес, али одређене расе које потичу из топлијих региона јужне Кине, као што су лучуанске свиње, диананске свиње са малим ушима, бамаксианг свиње и вужишан свиње, поседују особине отпорности на топлоту које би могле помоћи у генетским решењима за адаптацију.
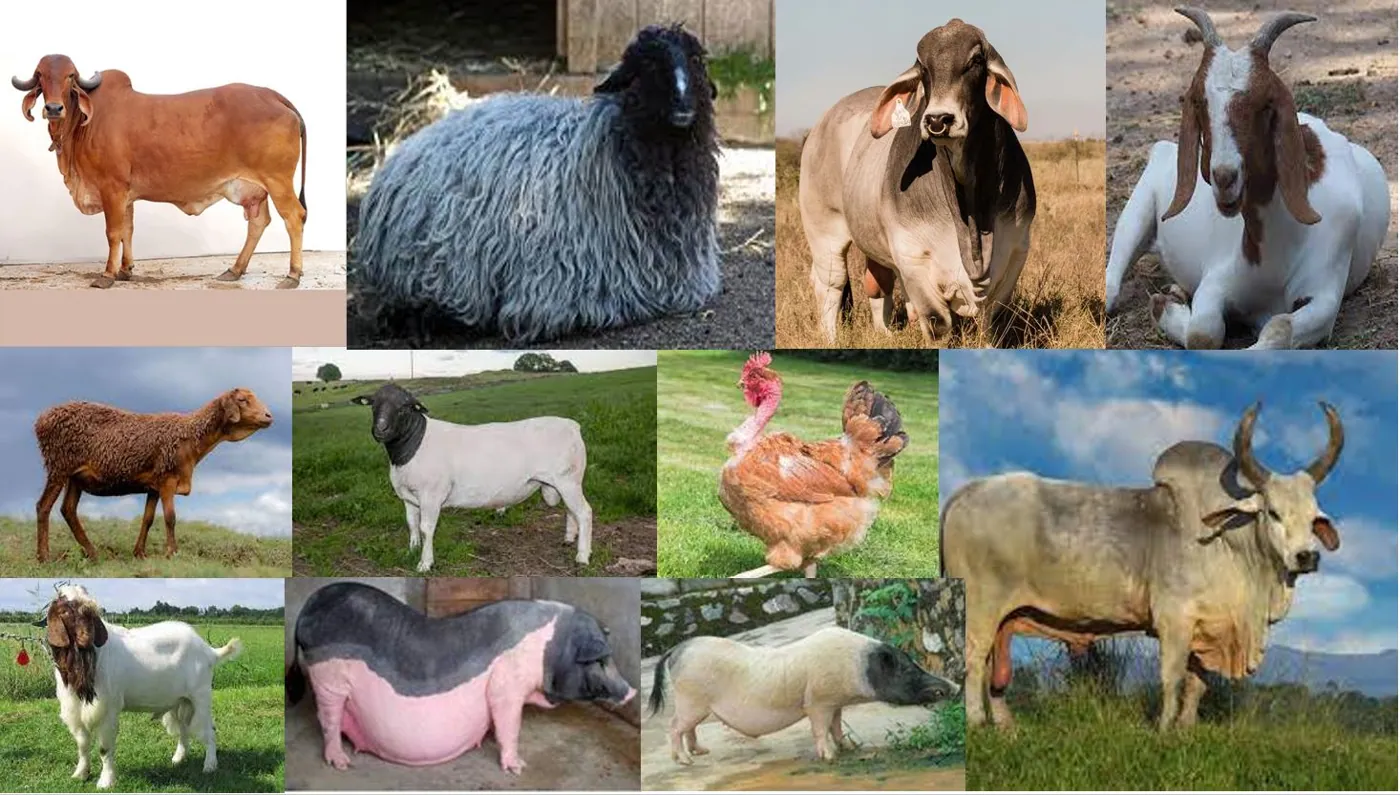
Анализа анатомских адаптација домаћих животиња као одговор на климатске промене је од суштинског значаја за осмишљавање ефикасних стратегија за одржање сточарске производње у условима глобалног загревања. Кроз проучавање и разумевање ових адаптација, истраживачи и менаџери стоке могу радити на спровођењу мера за побољшање добробити и продуктивности домаћих животиња у условима климатских промена.
Понашајне (бихејвиоралне) стратегије
Поред физиолошких, биохемијских, имунолошких и анатомских адаптација, животиње на фарми такође користе различите стратегије понашања како би се избориле са климатским променама [10]. Ове стратегије укључују промене у свакодневним активностима и обрасцима како би се ублажио утицај топлотног стреса и одржала термална хомеостаза [43]:
-Тражење сеновитих и хладнијих подручја, купање или прскање водом како би се смањило излагање директној сунчевој светлости и расхладило [9;10 ]. Говеда генерално преферирају сенку дрвећа у односу на сеновите заштитне структуре које је направио човек, због високог хлађења испаравањем које обезбеђује лишће дрвећа [49]. Живина се хлади ширењем крила, док се свиње, као најосетљивије, хладе у блату и лежећи на хладнијим површинама.
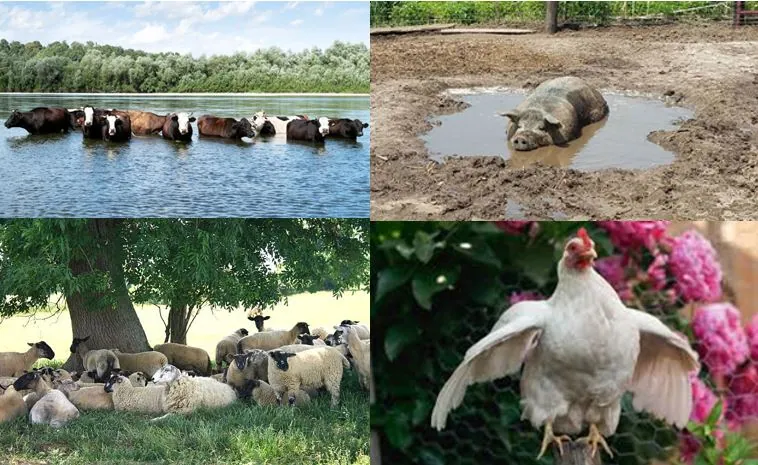
-Како се топлотно оптерећење повећава, краве испољавају тенденцију да смање време одмора и повећају време проведено у стојећем положају [50]. На овај начин повећавају своју површину тела, олакшавајући губитак топлоте испаравањем, потенцијално спречавајући радијативну и конвективну топлоту са тла [51]. Употреба прскалица и вентилатора на фармама ефикасно смањује топлотно оптерећење, чиме се може утицати на повећање времена одмора крава тј. лежања.
-Промене у исхрани и понашању у потрази за храном односе се на смањен унос хране како би се смањило метаболичко оптерећење организма. Код крава на испаши примећује се прелазак на ноћну испашу при екстремно високим дневним температурама.
-Како се топлотно оптерећење повећава, учесталост дефекације и уринирања се смањује, првенствено у зависности од доступности хране, воде и температуре околине [52]. Утврђено је да краве под топлотним стресом показују значајно смањење учесталости уринирања.
-Постоји и повећана потреба за водом у тешким амбијенталним условима. Потрошња воде расте у условима топлотног стреса, а краве обично преферирају воду умерене температуре. Стручњаци често препоручују давање хладне воде током врућих услова или воде испод телесне температуре како би се одржала телесна температура.
Способност домаћих животиња да испоље одређене облике понашања током топлотног стреса одражава њихово урођено и инстинктивно разумевање амбијенталних сигнала и њихову способност да прилагоде своје уобичајене понашајне обрасце како би се адаптирале.
Референце
Gaughan, J. B., Sejian, V., Mader, T. L., & Dunshea, F. R. (2019). Adaptation strategies: Ruminants. Animal Frontiers, 9(1), 47–53.
Henry, B., Eckard, R., & Beauchemin, K. A. (2018). Review: Adaptation of ruminant livestock production systems to climate changes. Animal, 12, s445–s456.
Cheng, M., McCarl, B., & Fei, C. (2022). Climate Change and Livestock Production: A Literature Review. Atmosphere, 13(1), Article 1.
Collier RJ, Collier JL, Rhoads RP, Baumgard LH. (2008). Invited review: genes involved in the bovine heat stress response. J Dairy Sci, 91, 445-454.
Athira P. Ratnakaran, V. Sejian, V. Sanjo Jose, Shalini Vaswani, M. Bagath, G. Krishnan, V. Beena, P. Indira Devi, Girish Varma and R. Bhatta (2017). Behavioral Responses to Livestock Adaptation to Heat Stress Challenges. Asian Journal of Animal Sciences, 11: 1-13.
Sejian, V., Bhatta, R., Gaughan, J. B., Dunshea, F. R., & Lacetera, N. (2018). Review: Adaptation of animals to heat stress. Animal, 12(s2), s431–s444.
Hall S.J.G. (2004) Livestock Biodiversity. Genetic Resources for the Farming of the Future. Blackwell, Oxford, 264 pp.
McManus C., Prescott E., Paludo G.R., Bianchini E., Louvandini H. & Mariante A.S. (2008) Heat tolerance in naturalized Brazilian cattle breeds. Livestock Science 120, 256–64.
Zhang, Y. W., McCarl, B. A., & Jones, J. N. (2017). An Overview of Mitigation and Adaptation Needs and Strategies for the Livestock Sector. Climate, 5(4), 95–95.
Bernabucci, U. (2019). Climate change: Impact on livestock and how can we adapt. Animal Frontiers, 9(1), 3–5.
Renaudeau, D., Collin, A., Yahav, S., de Basilio, V., Gourdine, J. L., & Collier, R. J. (2012). Adaptation to hot climate and strategies to alleviate heat stress in livestock production. Animal : an international journal of animal bioscience, 6(5), 707–728.
Maibam U, Hooda OM, Sharma PS, Singh SV, Upadhyay RC. (2017). Seasonal change in oxidative stress markers in blood plasma of Tharparkar (Bos indicus) and Karan Fries (Bos indicus x Bos taurus) cattle under tropical climate. Int J Curr Microbiol App Sci, 6, 1720-30.
El-Tarabany MS, El-Tarabany AA, Atta MA. (2017). Physiological and lactation responses of Egyptian dairy Baladi goats to natural thermal stress under subtropical environmental conditions. Int J Biometeorol, 61, 61-68.
Berihulay, H., Abied, A., He, X., Jiang, L., & Ma, Y. (2019). Adaptation Mechanisms of Small Ruminants to Environmental Heat Stress. Animals, 9(3), Article 3.
Romanello N, Junior JD, Junior WB, Brandão FZ, Marcondes CR, Pezzopane JR et al. (2018). Thermoregulatory responses and reproductive traits in composite beef bulls raised in a tropical climate. Int J Biometeorol, 7, 1-2.
Sheba MJ, Kumar M, Balasubramanian P, Dharmaraj M, Mohankumar PS. (2012). Neuroendocrine regulation of adaptive mechanisms in livestock. In: Sejian V, Naqvi SMK, Ezeji T, Lakritz J, Lal R. (Eds.), Environmental stress and amelioration in livestock production. Springer-Verlag Publisher, New York, 263-298.
Chen Y, Arsenault R, Napper S, Griebel P. (2015). Models and Methods to Investigate Acute Stress Responses in Cattle. Animals, 5, 1268-1295.
Zhang L, Ying SJ, An WJ, Lian H, Zhou GB, Han ZY. (2014). Effects of dietary betaine supplementation subjected to heat stress on milk performances and physiology indices in dairy cow. Genetics and Molecular Research, 13, 7577-7586.
Kahl S, Elsasser TH, Rhoads RP, Collier RJ, Baumgard LH. (2015). Environmental heat stress modulates thyroid status and its response to repeated endotoxin challenge in steers. Domest Anim Endocrinol, 52, 43-50.
Marai IF, Habeeb AA. (2010). Buffaloes reproductive and productive traits as affected by heat stress. Trop Subtrop Agroecosyst, 12, 2.
Garkal RA, Kekan PM, Kharde SD, Munde VK, Narladkar BW, Vaidya MS. (2016). Effect of different housing systems on haematological parameters of buffaloes. Buffalo Bull, 35, 191-198.
Rasooli A, Nouri M, Khadjeh GH, Rasekh A. (2004). The influences of seasonal variations on thyroid activity and some biochemical parameters of cattle. Iranian J Vet Res, 5, 1383-2004.
Alberghina D, Piccione G, Casella S, Panzera M, Morgante M. (2013). The effect of the season on some blood metabolites and haptoglobin in dairy cows during the postpartum period. Arch Anim Breed, 56, 354-359.
Skibiel AL, Zachut M, do Amaral BC, Levin Y, Dahl GE. (2018). Liver proteomic analysis of postpartum Holstein cows exposed to heat stress or cooling conditions during the dry period. J Dairy Sci, 101, 705-716.
Baumgard LH, Rhoads RP. (2013). Effects of heat stress on postabsorptive metabolism and energetics. Ann RevAnim Biosci, 1, 311-337.
Basirico L, Morera P, Primi V, Lacetera N, Nardone A, Bernabucci U. (2011). Cellular thermotolerance is associated with heat shock protein 70.1 genetic polymorphisms in Holstein lactating cows. Cell Stress Chaperones, 16, 441-448.
Saxena VK, Krishnaswamy N. Molecular mechanisms of livestock adaptation. In: Environmental Stress and Amelioration in Livestock Production. Sejian V, Naqvi SMK, Ezeji T, Lakritz J, Lal R (eds). Springer-Verlag, Germany; 2012. p. 299-315.
Kumar J, Madan AK, Kumar M, Sirohi R, Yadav B, Reddy AV, et al. (2017). Impact of season on antioxidants, nutritional metabolic status, cortisol and heat shock proteins in Hariana and Sahiwal cattle. Biol Rhythm Res, 1-10.
Caroprese, M., Bradford, B. J., & Rhoads, R. P. (2021). Editorial: Impact of Climate Change on Immune Responses in Agricultural Animals. Frontiers in Veterinary Science, 8, 732203.
Dahl, G. E., Tao, S., & Laporta, J. (2020). Heat Stress Impacts Immune Status in Cows Across the Life Cycle. Frontiers in Veterinary Science, 7.
Hussen, J. (2021). Changes in Cell Vitality, Phenotype, and Function of Dromedary Camel Leukocytes After Whole Blood Exposure to Heat Stress in vitro. Frontiers in Veterinary Science, 8.
Hansen, P. J. (2004). Physiological and cellular adaptations of zebu cattle to thermal stress. Animal reproduction science, 82, 349-360.
Bharati J, Dangi SS, Mishra SR, Chouhan VS, Verma V, Shankar O, Bharti MK, Paul A, Mahato DK, Rajesh G and Singh G 2017. Expression analysis of toll like receptors and interleukins in Tharparkar cattle during acclimation to heat stress exposure. Journal of Thermal Biology 65, 48–56.
Sophia I, Sejian V, Bagath M and Bhatta R 2016. Quantitative expression of hepatic Toll-Like Receptor 1–10 mRNA in Osmanabadi goats during different climatic stresses. Small Ruminant Research 141, 11–16.
Almeida, A. M. (2011). The Damara in the context of Southern Africa fat-tailed sheep breeds. Tropical Animal Health and Production, 43(7), 1427–1441.
Astuti, P. K., Bagi, Z., Bodrogi, L., Pintér, T., Skoda, G., Fajardo, R., & Kusza, S. (2023). Hungarian indigenous Tsigai, a promising breed for excellent heat tolerance and immunity. Saudi Journal of Biological Sciences, 30(9), 10374737
Daramola J.O., Adeloye A.A. (2009): Physiological adaptation to the humid tropics with special reference to the West African Dwarf (WAD) goat. Tropical Animal Health and Production 41, 7, 1005–1016.
FAO (2007) In: The State of the WorldÕs Animal Genetic Resources for Food and Agriculture (Ed. by B. Rischkowsky & D. Pilling). FAO, Rome, 511 pp.
Lees, A M., Sejian, V., Wallage, A L., Steel, C C., Mader, T L., Lees, J C., & Gaughan, J B. (2019, June 6). The Impact of Heat Load on Cattle.
Carabaño, M. J., Ramón, M., Menéndez-Buxadera, A., Molina, A., & Díaz, C. (2019). Selecting for heat tolerance. Animals and Frontiers, 9(1), 62–68.
Silanikove, N., & Koluman, N. (2015). Impact of climate change on the dairy industry in temperate zones: predications on the overall negative impact and on the positive role of dairy goats in adaptation to earth warming. Small Ruminant Research, 123, 27-34.
da Silva, W. C., da Silva, É. B. R., Dos Santos, M. R. P., Camargo Junior, R. N. C., Barbosa, A. V. C., da Silva, J. A. R., Vinhote, J. A., de Sousa, E. D. V., & Lourenço Júnior, J. B. (2022). Behavior and thermal comfort of light and dark coat dairy cows in the Eastern Amazon. Frontiers in veterinary science, 9, 1006093.
Rojas-Downing, M. M., Nejadhashemi, A. P., Harrigan, T. M., & Woznicki, S. A. (2017). Climate change and livestock: Impacts, adaptation, and mitigation. Climate Risk Management. p.145-163.
Mahgoub O, Kadim IT, Al-Dhahab A, Bello RB, Al-Amri IS, Ali AAA and Khalaf S 2010. An assessment of Omani native sheep fiber production and quality characteristics. Journal of Agricultural and Marine Sciences 15, 9–14.
Khalifa, H. H. (2003). Bioclimatology and adaptation of farm animals in a changing climate. In N. Lacetera, U. Bernabucci, H. H. Khalifa, B. Ronchi, & A. Nordone (Eds.), Interactions between climate and animal production. Wageningen Academic Publishers.
Martin, J. M., Mead, J. I., & Barboza, P. S. (2018). Bison body size and climate change. Ecology and Evolution, 8(9), 4564–4574.
Elayadeth-Meethal, M., Thazhathu Veettil, A., Maloney, S. K., Hawkins, N., Misselbrook, T. H., Sejian, V., Rivero, M. J., & Lee, M. R. F. (2018). Size does matter: Parallel evolution of adaptive thermal tolerance and body size facilitates adaptation to climate change in domestic cattle. Ecology and Evolution, 8(21), 10608–10620.
Ryding, S., Klaassen, M., Tattersall, G. J., Gardner, J. L., & Symonds, M. R. E. (2021). Shape-shifting: Changing animal morphologies as a response to climatic warming. Trends in Ecology and Evolution, 36(11), 1036–1048.
Veissier, I., Palme, R., Moons, C. P., Ampe, B., Sonck, B., Andanson, S., & Tuyttens, F. A. (2018). Heat stress in cows at pasture and benefit of shade in a temperate climate region. International Journal of Biometeorology, 62, 585-595.
Schutz, K. E., Rogers, A. R., Poulouin, Y. A., Cox, N. R., & Tucker, C. B. (2010). The amount of shade influences the behavior and physiology of dairy cattle. Journal of Dairy Science, 93, 125-133.
Kamal, R., Dutt, T., Patel, M., Dey, A., Chandran, P. C., Bharti, P. K., et al. (2016). Behavioural, biochemical and hormonal responses of heat-stressed crossbred calves to different shade materials. Journal of Applied Animal Research, 44, 347-354.
Ratnakaran, A. P., Sejian, V., Sanjo Jose, V., Vaswani, S., & Bagath, M. (2017). Behavioral responses to livestock adaptation to heat stress challenges. Asian Journal of Animal Science, 11, 1-3.